化学:在分子世界中创造无限可能
化学,是一门在分子层次上研究物质的组成、结构、性质、转化及应用的学科。
它既探索自然界中那些早已存在的天然物质,又凭借人类的智慧与双手,创造出自然界中从未有过的全新物质。
正因如此,化学被誉为自然科学的中心学科,是连接物理、生物、材料、能源、环境等众多领域的桥梁。
编辑搜图
从水的电解到氢气的燃烧,从氯化钠的形成到有机分子的构筑,化学向我们揭示了一个精彩纷呈的微观世界:分子由原子构成,化学变化的本质是分子破裂为原子、原子重新组合成新的分子。
这个过程中,物质的性质悄然改变,新的物质应运而生。
无论是维持生命的氧气,还是推动工业发展的合成材料,无一不是化学研究的对象与成果。
编辑搜图
化学的独特魅力在于“创造”。
人类不仅能够认识世界,更能改造世界。
今天,我们所用的塑料、纤维、药物、半导体材料,乃至航空航天所需的特殊合金与推进剂,许多都是化学家设计并合成的全新物质。
这些自然界中并不存在的分子,深刻改变了人类的衣食住行和健康水平,也支撑起现代科技文明的基石。

编辑搜图
作为自然科学的中心学科,化学还不断与其他学科交叉融合。
它推动分子生物学揭开生命的奥秘,为信息技术提供高纯度的半导体材料,为清洁能源开发高效催化剂,为环境保护设计可降解材料。
可以说,没有化学,就没有现代社会的物质基础,也难以应对未来人类面临的资源、能源与健康挑战。
编辑搜图
化学,是在分子层次上书写的一部关于物质变化的壮丽史诗。
它既仰望星空,探索宇宙深处的化学组成;又脚踏实地,服务于人类日常生活的方方面面。
这门既古老又年轻的学科,始终站在认识自然、改造自然、创造未来的最前沿。
不只靶向 E3酶,E2 泛素结合酶也能开发小分子抑制剂
期刊:Journal of Medicinal Chemistry DOI:10.1021/acs.jmedchem.6c01896 泛素化药物研发,靶点不止 E3 近期,一项发表于Journal of Medicinal Chemistry的研究便聚焦于 E2 泛素结合酶 UBE2D2。研究人员通过亲电试剂优先筛选(electrophile-first) 与 X 射线晶体学相结合的策略,发现了能够结合 UBE2D2 的新型小分子 XY54,并进一步利用蛋白-小分子共晶结构指导化合物优化,获得了对催化位点 C85 具有更明确结合偏好的候选化合物 XY54-24。
这项研究为理解 E2 的小分子结合机制,以及利用结构信息开发相关抑制剂,提供了新的研究基础。
亲电试剂优先筛选锁定苗头化合物XY54 为快速发掘共价活性分子,研究团队采用亲电试剂优先筛选策略,对带有共价弹头的化合物库进行直接筛选。
依托DSF、ABPP这两种成熟经典的生化筛选手段,团队最终鉴定得到骨架新颖的氨基噻唑类苗头化合物 XY54。
图1. 针对UBE2D2的共价化合物库筛选 图2. UBE2D2-XY54复合物的共晶结构 同时,从结合模式发现,C85 口袋在酰胺取代区域留有空余空腔;而C111 周边氨基酸排布紧凑,空间很小。
这种口袋环境的差异,为后续位点选择性改造提供了结构依据。
共晶结构指导优化,提升位点选择性与结合亲和力 C85位于催化口袋内,是抑制中间体E2~Ub形成的关键位点,而C111位于蛋白表面,是非催化位点。
因此共价抑制剂的优化目标是保留并增强C85结合,同时削弱C111的结合。
图3. 针对XY54的酰胺基与酯基进行结构引导修饰的策略示意图,旨在提高其对C85的选择性与结合亲和力,同时降低对C111的结合。
研究人员根据共晶结构展现出的口袋差异,分两轮对XY54进行了理性优化改造。
第一轮改造聚焦酰胺侧链。
通过在酰胺氮上引入不同取代基团,以实现“C85 口袋可以接纳该侧链,C111 口袋产生空间位阻冲突” 的目标。
经过多批衍生物合成与生化活性评价,发现带有对羟基苯乙基取代的XY54‑19综合表现最优。
图4. XY54-19优先结合于UBE2D2的C85位点 第二轮改造针对甲酯基团。
XY54‑19 自带的甲酯基团容易水解,存在代谢短板。
研究人员将酯基替换为一系列 N‑取代酰胺,筛选适配 C85 口袋的最优基团。
构效数据表明,只有体积小巧的小环酰胺可以很好适配口袋,其中环丙基酰胺衍生物 XY54‑24性能最佳。
图5. 通过酯基团修饰对XY54-19进行优化 生化测试结果显示,XY54‑24针对C85的抑制活性相比原始苗头 XY54 提升近 10 倍;GSH 体外反应测试显示,XY54‑24 弹头的本征巯基反应活性与临床共价药物阿法替尼相近,活性处于适中水平。
针对 UBE2D 家族各亚型的平行评价表明,XY54‑24 对 UBE2D2 的抑制活性优于 UBE2D1/3/4,表现出一定亚型选择性。
图6. XY54-24以UBE2D2 C85为靶点,并抑制其酶活性 图7. XY54-24对UBE2D家族蛋白的结合亲和力 细胞水平验证:抑制 A549 增殖并诱导凋亡 体外酶活实验证实,XY54‑24 能够阻断 UBE2D2‑泛素硫酯中间体形成,直接抑制 UBE2D2 酶催化功能。
进入细胞体系后,该分子可以穿透细胞,在胞内靶向 UBE2D2,剂量依赖性抑制 A549 肺癌细胞增殖、诱导肿瘤细胞凋亡。
共价抑制剂特征的洗脱实验验证:小分子与靶蛋白形成稳定共价加合物后,即便洗去游离药物,抑制效果依旧维持。
搭配 siRNA 敲低实验进一步证明,化合物产生的细胞抑制作用部分依赖 UBE2D2 靶点,降低了表型来自非特异性毒性的可能性。
研究也客观指出先导分子的局限:活性仍处在微摩尔区间;同时人肝微粒体代谢半衰期短,距离适用于体内研究的高质量化学探针,还留有进一步优化空间。
图8. XY54-24可抑制A549细胞的增殖并诱导其凋亡 总结 这项研究以亲电试剂优先筛选结合X射线晶体学的手段,发现并优化得到了UBE2D2小分子配体XY54-24,其在细胞水平的实验结果证实,XY54-24能够抑制A549肺癌细胞的增殖。
在共价靶点开发中,DSF、ABPP 是快速验证小分子-蛋白互作、筛选活性苗头分子的经典手段,而共晶结构解析则是揭示结合模式、实现理性分子改造的核心利器。
青云瑞晶可以提供一站式的DSF、ABPP 生化筛选、蛋白-小分子共晶结构解析服务,助力共价抑制剂、分子胶、PROTAC 等项目锁定苗头化合物、解析结合模式、指导位点选择性改造,加速泛素化、激酶等热门靶点的药物研发进程。
青云瑞晶结构生物学服务,,, 点击了解详情 小程序
量子信息+熵,能解释宇宙的演化吗
热力学第二定律,也许是物理里最根本的几条原理之一。它说,一个系统的熵只会随时间增加,不会减少。
这也是唯一一条能指明"时间箭头"朝哪走的物理定律。
熵,说白了就是无序的程度:熵越低,结构越有序;熵越高,越散乱。
糖从浓处向淡处扩散、气体膨胀、咖啡放凉,背后都是熵在增加。
人们相信,宇宙的演化也遵循这条定律。
宇宙早年处于低熵状态,一路演化到高熵。
可就在这个过程中,宇宙造出了一些极其复杂的结构——星系就是代表。
星系的熵很低,却是在一个高熵的环境里形成的。
这看起来像是在违反第二定律。
这个存在已久的矛盾,正是物理学家金妮斯特拉·比安科尼想解决的难题。
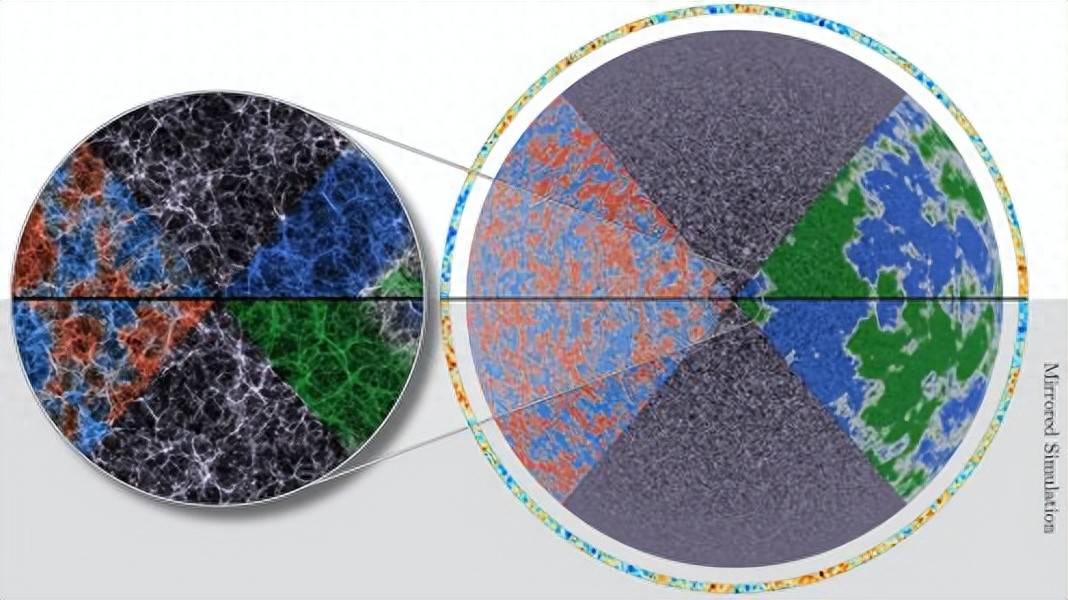
引力、熵与量子信息的交织,是比安科尼理论的视觉主题(图片来源:Physics World) 在爱因斯坦的广义相对论里,有个叫"度规"的数学对象,描述时空是怎么弯曲的;物质沿着这条弯曲走,就表现成了引力。
而在量子力学里,"算符"是对量子态做变换的数学工具。
比安科尼的关键一步,就是把这个"度规"当成量子算符来用,用量子化的方式描述时空的几何。
这样一来,会冒出两个"度规":一个是"真实"的时空度规,一个是由物质和能量诱导出来的度规。
两者之间"差多少",用量子信息论里的一个量来度量,叫量子相对熵。
正是这两个几何之间的量子相对熵,决定了时空怎么演化——换句话说,它给出的运动方程,就是引力。
在低曲率极限下,这套方程能精确还原爱因斯坦的广义相对论。
可一旦超出这个极限,方程就得被一个叫"G场"的对象修正。
G场生出一个暗能量项,而且是动态的。
暗能量被认为是直接推动宇宙膨胀的东西;在标准广义相对论里,它由静态的宇宙学常数驱动。
现在冒出一个动态的暗能量项,就有了被实验检验的机会。
比安科尼又把这套理论用到了弗里德曼-罗伯逊-沃克(FRW)宇宙模型上。
这是广义相对论对宇宙行为的一级近似,假设宇宙各向同性、处处均匀、且在膨胀。
膨胀由宇宙的主导成分驱动——暗物质、普通物质,或辐射。
宇宙膨胀时,体积变大,总熵也跟着变大。
但正因为体积涨得更快,单位体积里的熵——也就是熵密度——反而随时间下降。
总熵在涨,局部熵密度却在降,这就给了星系、甚至生命这类低熵结构一个在膨胀宇宙里被造出来的机制。
那这算不算违反第二定律?比安科尼用非空的 FRW 宇宙算了一遍总熵:要把熵密度在整个时空区域上积分,而因为体积随时间变大,总熵成了时间的函数——膨胀的速度超过了熵密度衰减的速度。
所以对辐射主导和物质主导的宇宙,总熵依然随时间增加,第二定律照样成立,尽管局部熵密度在下降。
比安科尼强调,GfE 理论还很年轻,需要实验来验证。
但这项工作揭示了它内在的热力学本质,为经典引力与量子引力都打开了新路——把引力用"量子信息"和"熵"来表述,也许正是通向"量子化引力"这个百年难题的另一条路径。
引力,也许并不是什么神秘的基本力,而只是信息与熵的必然结果。
若真如此,宇宙为什么要演化、为什么能长出星系和生命,答案也许就藏在这条最普通的第二定律里。
来源:S. Jones, "Could quantum information theory explain universe evolution?" Physics World, 14 Sep 2026. 报道所引研究:G. Bianconi, Physical Review D.